重磅发布!肿瘤类器官模型助力揭示高脂饮食促进肿瘤生长的新机制!
发布时间:2025/06/19 14:00:00
近日,上海交通大学医学院附属瑞金医院、中国科学院生物物理研究所与嘉士腾合作在国际双1区顶尖期刊Advanced Science(IF: 14.3)上发表了题为“Lipid Droplet-Organized MDM2-Mediated P53 Degradation: A Metabolic Switch Governing Diet-Driven Tumor Progression”的研究论文。嘉士腾提供了全套的肿瘤类器官、类器官移植瘤小鼠模型(PDOX)的建模服务。
该研究通过整合分析临床数据和大量使用肿瘤类器官模型,首次报道p53可定位于脂滴(LDs)上且在LDs上发生泛素化降解的过程。高脂饮食导致肿瘤细胞LDs积累增多;胞质中的Myh9将p53捕获并带至LDs,在LDs固有蛋白Cyb5r3的帮助下,p53顺利定位LDs表面,随后被LDs上的MDM2泛素化降解。此外,p53负调控CD36表达,其机制为p53与RPS3A结合,阻碍RPS3A携带C/EBPβ入核,导致PPARγ表达减少,进而抑制CD36表达。然而,p53降解后,促进RPS3A携带C/EBPβ入核,上调CD36表达,促进LDs积累,进一步降解p53,形成恶性循环,促进肿瘤生长。该研究为肿瘤患者提供了潜在的治疗靶点和合理的饮食建议。

01 研究背景
p53被称为“基因组的守护者”,它能调节细胞生长、DNA修复以及细胞凋亡。p53通过监测DNA损伤并启动修复、细胞周期停滞或细胞死亡来预防癌症。然而,在多数人类癌症中,p53基因发生突变或失活,导致其肿瘤抑制功能丧失。因此,恢复p53功能或针对调节p53的通路进行靶向治疗已成为癌症治疗和药物开发的重要策略。截止目前为止,MDM2被认为是最强有效的凋亡抑制剂,且与恶性肿瘤密切相关。尽管目前对MDM2介导的p53降解过程有了较深入的了解,但肿瘤细胞如何启动这一过程仍不清楚。
脂滴(Lipid droplets, LDs)是一种由单层磷脂膜包裹的、富含中性脂的细胞器,在促进肿瘤发生、发展和转移等过程中起着重要作用。据报道,饮食脂肪可增加实体瘤生长和转移的风险,并增加肿瘤细胞中LDs的丰度。然而,目前对饮食与肿瘤生长之间关系的理解依然存在空白。既往研究发现,LDs可以将Notch抑制剂Numb和E3泛素蛋白连接酶MDM2招募到 LDs表面,促进MDM2介导的Numb降解,进而激活Notch信号。LDs还可通过泛素-蛋白酶体系统介导非LDs蛋白的降解,从而控制其质量和数量。基于此,该研究假设,肿瘤抑制因子p53可能被招募到LDs上,且随后通过MDM2降解。
该研究旨在确定LDs是否以及如何在肿瘤细胞中启动MDM2介导的p53降解。通过分析临床数据和肿瘤类器官模型,研究首次报道p53定位于LDs上,并进一步阐明了LDs通过p53和Myh9复合物促进MDM2介导的p53泛素化,该复合物由Cyb5r3招募至LDs。此外,在肿瘤发生过程中,该研究也发现了一个涉及LDs和p53的正反馈调节环,其中包括甘油三酯、MDM2、p53、Myh9、Cyb5r3、RPS3A、C/EBPβ、PPARγ 和 CD36。这些发现揭示了LDs在肿瘤发展中的直接作用,并提供了一种新型的MDM2介导p53降解的机制,为癌症患者提供了潜在的治疗靶点和合理的饮食建议。
02 主要方法
(1)细胞培养
(2)小鼠与异种移植模型构建
(3)RNA测序(RNA-Seq)
(4)实时定量PCR(RT-qPCR)
(5)shRNA慢病毒制备与感染
(6)过表达实验
(7)免疫荧光、DAB、HE及油红O染色
(8)免疫沉淀实验及Western Blotting法
(9)LDs分离
(10)流式细胞术
(11)肿瘤类器官培养与分析
(12)PDOX模型的构建
03 研究结果
3.1 高甘油三酯血症与肿瘤进展正相关
通过分析673例乳腺癌患者和854例胰腺癌患者的临床脂质相关参数如体重指数(BMI)和血液甘油三酯水平,研究发现高BMI与更晚期的肿瘤进展呈正相关(图1A-C)。多变量分析进一步证实,BMI较高的超重个体比BMI正常的个体预后更差,且高甘油三酯血症是肿瘤进展的危险因素(图1D)。
为了证实高甘油三酯血症的促肿瘤作用,研究建立了含或不含高脂饮食 (HFD)的肿瘤模型,即将6周龄雌性小鼠随机分为正常饮食(ND)组(10%脂肪饮食)和HFD组(60%脂肪饮食)(图1E)。连续ND或HFD喂养8周后,HFD组小鼠血清甘油三酯水平显着升高(图1F)。然后,在每组中建立自发性转移(SM,将4T1乳腺癌细胞注射到乳腺或将Pan02胰腺癌细胞注射到胰腺)和实验转移(EM,通过小鼠尾静脉将肿瘤细胞注射到外周血中)肿瘤模型(图1E),发现在HFD喂养的小鼠中,源自4T1或Pan02细胞的原位肿瘤体积较ND喂养的小鼠更大(图1I、J)。无论是SM还是EM肿瘤模型,HFD喂养的小鼠4T1肿瘤肺转移及Pan02肿瘤肝转移明显增多(图1K、L)。这些数据表明,脂质积累会加速原位肿瘤及转移性肿瘤的生长。
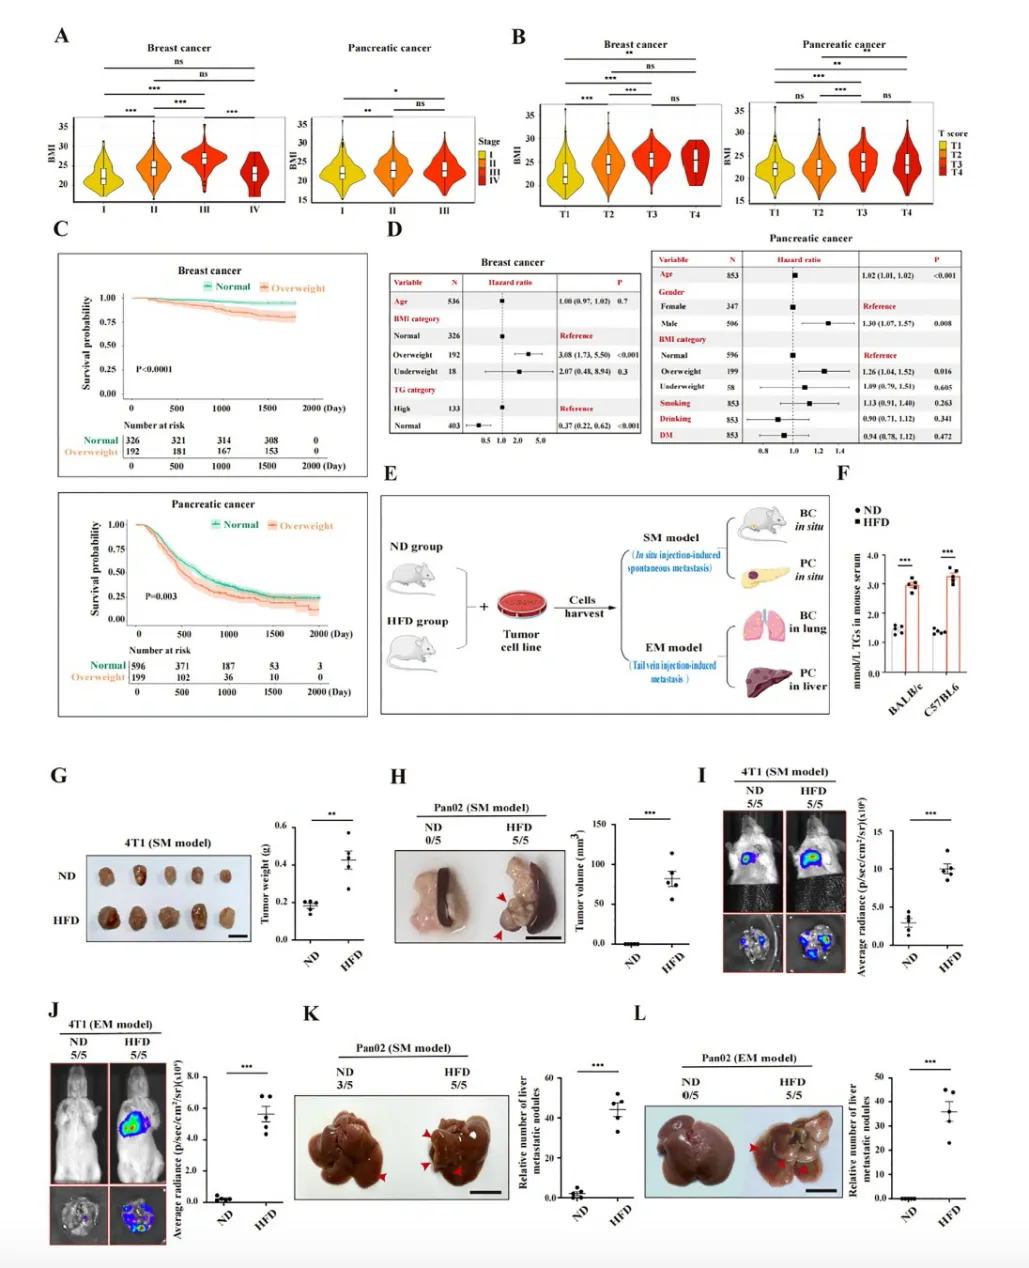
图1. 高甘油三酯血症与乳腺癌和胰腺癌患者的肿瘤进展呈正相关
3.2 细胞内LDs促进肿瘤生长
如图2A所示,HFD喂养的小鼠肿瘤中检测到大量LDs,表明LDs与肿瘤发展密切相关。通过测量ND或HFD喂养小鼠血清补充条件培养基培养的肿瘤细胞的增殖,发现HFD喂养小鼠的血清显著促进了肿瘤细胞中LDs的形成。此外,肿瘤细胞在HFD刺激下增殖明显加速,但这种促增殖能力在添加脂肪生成抑制剂triacsin C后被明显抑制(图2B),表明LDs形成促进肿瘤生长。
为了证实LDs促进肿瘤细胞的增殖,研究采用油酸(OA)刺激小鼠或人肿瘤细胞系,发现单独使用OA可显著促进肿瘤细胞系的增殖,且这种作用被triacsin C拮抗(图2C)。为了进一步验证细胞内LDs的促肿瘤作用,研究接下来探讨了脂质积累是否能促进肿瘤类器官的生长。我们发现,无论是否使用triacsin C,采用高甘油三酯血清或OA培养的肿瘤类器官直径均大于其他组,而添加 triacsin C可显著抑制脂质积累和类器官生长(图2D-J)。重要的是,在人类乳腺癌或胰腺癌来源的肿瘤类器官中也获得了类似的结果。
通过将患者来源的乳腺癌和胰腺癌类器官移植到免疫缺陷小鼠中建立患者来源的类器官异种移植物(PDOXs),发现用高甘油三酯血清或OA刺激可显著增加肿瘤类器官的致瘤性和异种移植肿瘤生长能力(图2K、L)。此外,高甘油三酯血清或OA刺激也可显著增加肿瘤内脂质积累(图2M)。这些发现表明,高脂环境可导致肿瘤细胞内LDs增加,从而增强致瘤性和肿瘤生长。

图2. 细胞内LDs促进肿瘤生长
3.3 肿瘤细胞中LDs促进p53降解
为了探究细胞内LDs促肿瘤能力的分子机制,研究进行了RNA测序分析,以比较ND或HFD喂养小鼠的原位或转移肿瘤组织中由高甘油三酯血清或OA刺激的4T1细胞的转录谱(图3A)。ND和HFD小鼠4T1原位肿瘤RNA-seq分析显示,脂质积累可导致p53通路相关基因下调(图3B),MYC通路相关基因上调。假设脂质积累可能通过促进p53降解来促进肿瘤生长,使用高甘油三酯血清或OA刺激可降低肿瘤细胞中p53蛋白的水平(图3C、D),而用 triacsin C 处理可增加肿瘤细胞中p53蛋白的水平。在肿瘤类器官、荷瘤小鼠的肿瘤组织和PDOX模型中亦观察到类似结果(图3E-G)。通过使用蛋白酶体抑制剂MG-132,进一步证实了p53的转录后修饰,这导致细胞内p53蛋白水平增加。这些发现均表明,脂质积累可促进p53泛素化和降解。

图3. 肿瘤细胞中LDs促进p53降解
3.4 LDs通过Cyb5r3与Myh9的相互作用增强MDM2介导的p53泛素化降解
Western Blotting分析显示,HFD可降低p53磷酸化水平,从而利于泛素化介导的蛋白质降解。荧光成像表面,p53位于LDs中(图4A)。为了研究MDM2是否在 LDs上泛素化 p53,研究构建了一种方法从对照细胞和OA刺激的细胞中分离 LDs。通过评估LDs上泛素化p53的水平,结果发现泛素化p53确实存在于LDs中(图4B)。此外,随着OA刺激细胞中LDs数量的增加,泛素化p53水平也显著增加。相反,用MDM2抑制剂AMG-232预处理细胞可导致泛素化p53水平显著降低,表明LDs上p53的泛素化由MDM2介导。
免疫沉淀实验显示,p53和Cyb5r3在肿瘤细胞纯化的LDs上相互作用(图4C)。敲低Cyb5r3可显著增加p53蛋白水平(图4D、E)。该实验还证实,p53和Myh9也在肿瘤细胞纯化的LDs上相互作用(图4F)。荧光成像进一步显示,Myh9与OA刺激细胞中的LDs共定位(图4G)。最后,shRNA介导的Myh9 敲低增加了p53蛋白水平,并抑制了p53向LDs的招募(图4H-J)。肥胖患者肿瘤标本的荧光成像进一步显示,p53蛋白水平与 Myh9/Cyb5r3表达呈负相关(图4K)。这些数据均表明,Myh9通过Cyb5r3将p53运输到LDs。

图4. LDs通过Cyb5r3与Myh9的相互作用增强MDM2介导的p53泛素化降解
3.5 p53降解促进RPS3A-C/EBPβ复合物的核转运,上调CD36的表达,增加细胞内LDs积累
RNA测序显示,PPAR通路在OA刺激的细胞中显著富集(图5A、B)。通过Western Blotting分析,我们发现高脂环境诱导的p53降解伴随PPARγ和CD36表达上调(图5C),提示p53降解可能通过上调CD36表达促进LDs形成。
通过抗p53抗体免疫沉淀结合质谱分析,在LDs纯化蛋白中发现核糖体蛋白RPS3A。免疫沉淀实验证实,p53与RPS3A在纯化后的肿瘤细胞LDs上相互作用(图5D),且两者共定位于LDs上。接下来,研究采用2种独立shRNA敲低p53,发现敲低p53可促进RPS3A在细胞核内富集(图5E),同时也可促进C/EBPβ定位于细胞核(图5F),且RPS3A与C/EBPβ在肿瘤细胞内相互作用(图5G)。Western Blotting显示,敲低p53可增加细胞核内RPS3A和C/EBPβ的积累,进而上调PPARγ和CD36表达(图5H)。反之,敲低RPS3A可抑制部分C/EBPβ在细胞核的积累。RPS3A降解有助于减少细胞核内C/EBPβ积累,下调 PPARγ 和CD36表达,并恢复p53蛋白水平(图5I)。此外,敲低RPS3A也可抑制肿瘤细胞中LDs的积累。可见,p53通过细胞质内结合RPS3A抑制其核转运,而p53降解释放RPS3A-C/EBPβ复合物,后者进入细胞核上调PPARγ/CD36 通路,促进LDs形成,最终形成 “LDs积累→p53降解→LDs进一步增多”的正反馈循环(图5J)。

图5. p53降解促进RPS3A-C/EBPβ复合物的核转运,上调CD36的表达,增加细胞内LDs积累
3.6 LDs-p53调控回路促进肿瘤生长
为验证p53和LDs正反馈回路在肿瘤发展中的核心作用,在OA刺激的肿瘤细胞中敲低Myh9、Cyb5r3或RPS3A,结果发现沉默任意一种基因均可显著抑制肿瘤细胞增殖(图6)。重要的是,过表达相应基因可部分恢复敲低细胞的增殖能力。在HFD诱导的皮下移植瘤模型中,敲低上述基因可抑制肿瘤形成和生长,且在肿瘤组织切片中也观察到脂质积累和p53表达,进一步证实了Myh9、Cyb5r3和RPS3A通过脂质积累调节p53的降解作用。这些结果表明,LD介导的p53降解和p53降解诱导的LD形成促进了肿瘤发展,为基于LD-p53回路的肿瘤治疗提供了新策略。

图6. LDs-p53调控回路促进肿瘤生长
3.7 脂质限制抑制肿瘤生长
通过建立饮食切换模型(图7A),研究发现从ND转为HFD的小鼠甘油三酯水平升高,而从HFD转为ND的鼠血清甘油三酯水平显著下降。与连续HFD喂养小鼠相比,连续ND喂养小鼠肿瘤体积更小,生存期更长。值得注意的是,与连续ND或HFD喂养小鼠相比,由ND转为至HFD喂养的荷瘤小鼠肿瘤生长加速,生存期缩短(图7C-G);与连续HFD或由ND转为HFD喂养的小鼠相比,由HFD转为ND喂养的小鼠原发灶和转移灶肿瘤的生长明显减缓(图7B-G)。饮食切换模型小鼠的原发和转移肿瘤组织中脂质积累和p53组织染色结果见图7H、I,进一步证实增加脂质积累可促进p53降解。

图7. 脂质限制抑制肿瘤生长
04结论
该研究揭示了一种新的机制通路,其中LDs启动MDM2介导胞质p53降解,在肿瘤发生和发展中具有关键作用。同时,研究也阐明了一种未知机制:LDs富集和Cyb5r3分子通过将p53/Myh9复合物锚定到LDs上来促进MDM2的泛素化,进而加速肿瘤细胞质p53的降解。此外,p53的降解也能触发RPS3A-C/EBPβ复合物从脂滴上释放,进而促进与LDs形成相关分子的表达。值得注意的是,饮食改变也可显著抑制肿瘤生长并增加p53水平。这些发现不仅为开发靶向MDM2-p53通路的肿瘤治疗策略提供了理论基础,还为HFD与肿瘤发展之间的复杂关系提供了新见解。
引用文献:
Liu H, Jing L, Li Y, et al. Lipid Droplet-Organized MDM2-Mediated P53 Degradation: A Metabolic Switch Governing Diet-Driven Tumor Progression. Adv Sci (Weinh). 2025:e03473. doi: 10.1002/advs.202503473.